01 细菌限制性修饰系统
细菌限制性修饰系统 (Restriction-modification systems ,R-M) 作为原核免疫系统攻击进入细胞的外源DNA,限制性修饰系统包含执行两种功能的酶:限制性内切酶 (REase) :负责结合特定的DNA序列 (识别位点),如果序列未甲基化,会将其识别位点的DNA序列进行切割;DNA甲基转移酶 (MTase) :负责识别相同DNA序列,并催化甲基转移到识别序列中的特定碱基上,从而保护其不被REase切割。
编码特定限制性内切酶的细菌基因及其同源甲基化酶在细菌染色体上彼此相邻,但不一定在同一方向上。紧密的物理连接减少了两个基因在细菌结合过程中因重组而分离的机会。
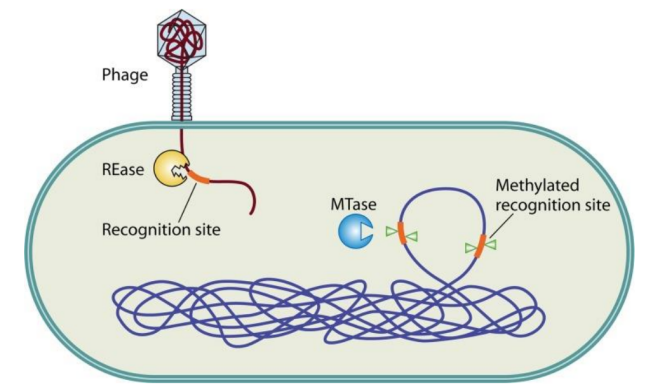
图1-细菌限制性修饰系统的防御功能
02 什么是限制性核酸内切酶?
限制性核酸内切酶是分子生物学的主要内容,作为位点特异性DNA识别、切割机制、体内功能和进化起源的模型。在R-M系统中的限制性内切酶与DNA中特定的核苷酸序列相互作用。识别的序列通常包含4到8个核苷酸,它们可以是连续的或中断的,对称的或不对称的,唯一的或简并的。
03 限制性内切酶分类
根据亚基组成、识别序列、切割位置和辅因子需求,限制性内切酶分为四大类型:
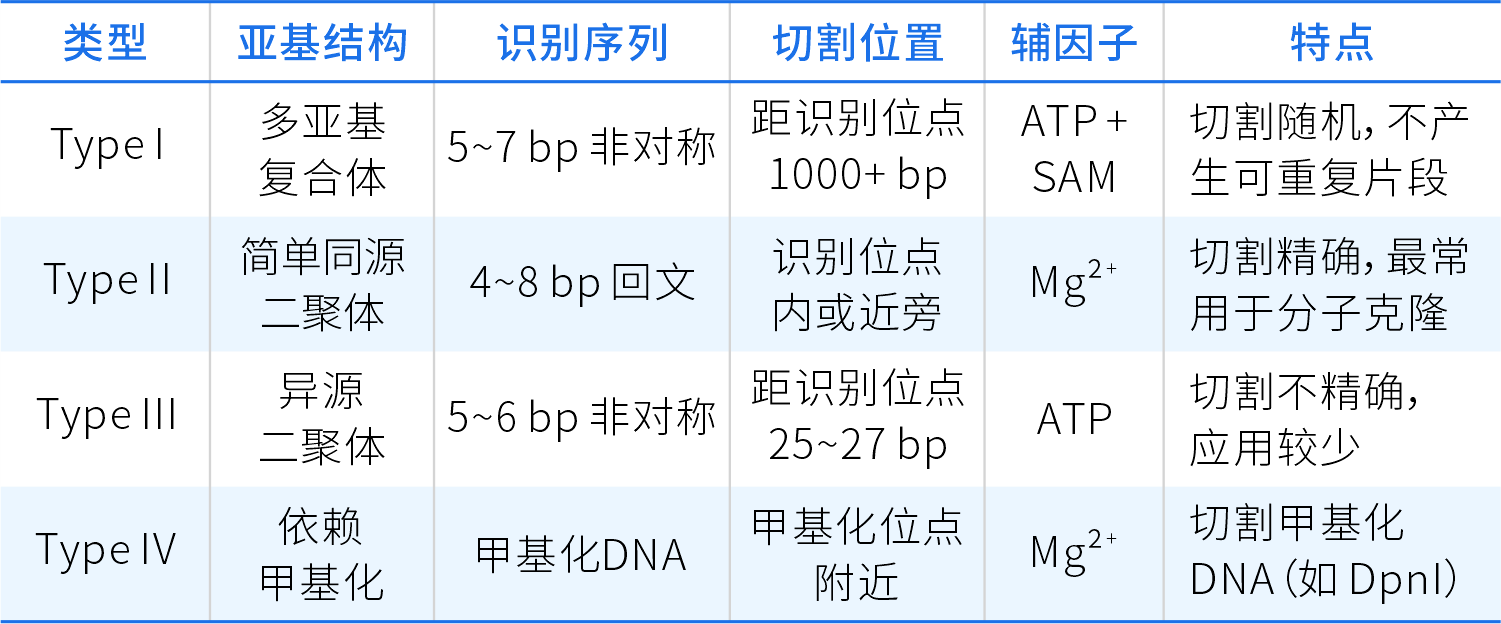
04 II 型限制性内切酶分类标准
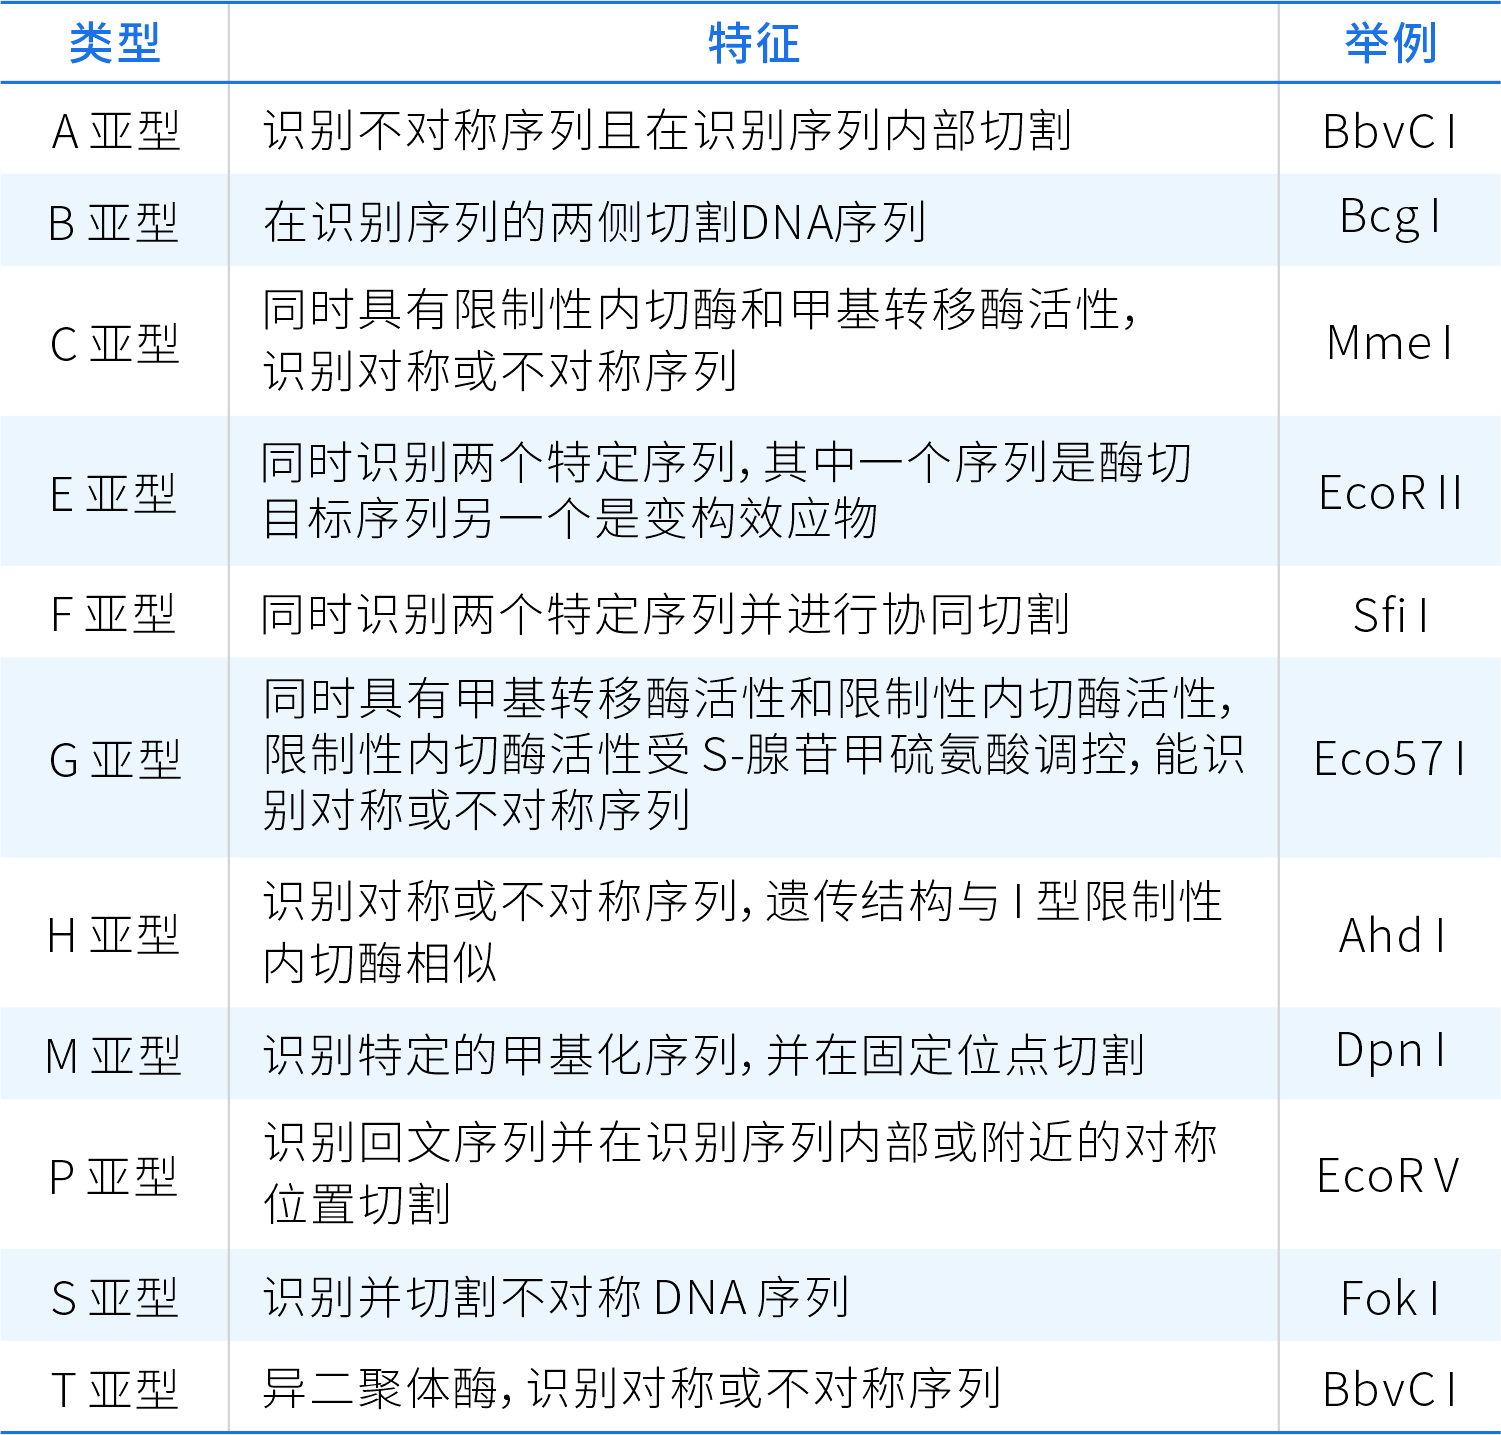
将限制性内切酶分类为II型限制性内切酶的主要标准是能在识别位点内部或外部(通常在20bp内)的固定位置上特异性切割两条DNA链,并且不需要ATP水解提供能量,根据各自亚型的特性将II型限制性内切酶分类,分类标准如下:
- 识别序列的对称性,如II A型与II P型;
- DNA切割的位置,在识别位点上或远离识别位点如II P型、II S型,如果切割的位置远离识别位点,切割在位点的一侧还是两侧如II S与II B型;
- II型限制性内切酶与其同源甲基转移酶是否以独立的形式存在,如II C型在一个多肽中同时具有两种活性;
- 是否需要辅因子镁离子和s -腺苷甲硫氨酸;
- 作用模式,是否需要与两个识别位点相互作用后,在其中一个或两个位点切割DNA如II E型和II F型。
05 II 型限制性内切酶分类
由于这些分类标准之间并不相互排斥,因此一个II型限制性内切酶可以同时属于多个子类型如,Bcg I既属于II A型又属于II B型。
II型限制性内切酶分类
06 Ⅱ型限制性内切酶的催化机制
II型限制性内切酶的活性位点已在许多不同的金属结合态的晶体学上观察到。II型限制性内切酶的催化结构域有一个共同的结构核心,由两侧的α-螺旋和中央四股混合β-折叠组成αβββαβ拓扑结构。
核心作为保守活性位点的支架,通常由两个或三个酸性残基(天冬氨酸或谷氨酸)和一个赖氨酸残基组成,共同形成PD-(D/E)XK基序 (X是任何氨基酸,见图2) ,活性位点位于第二和第三核心β折叠的Y形弯曲中,该Y形弯曲将催化残基(天冬氨酸,谷氨酸和赖氨酸)从相对保守的PD-(D/E)XK基序中暴露出来,这些残基起着催化作用,包括多达三种二价金属离子辅助因子的配位,第四个核心β折叠往往具有很强的疏水性,它深深地埋在结构的疏水核心内。这种α/β/α三明治折叠能够容纳许多修饰。
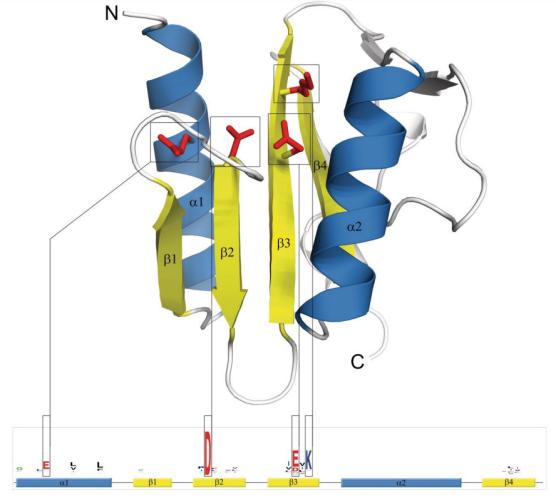
图2-PD-(D/E)XK基序
07 Ⅱ型限制性内切酶应用
分子克隆:质粒构建、片段插入、载体线性化——酶切+连接是重组DNA技术的核心;
基因型鉴定:RFLP限制性片段长度多态性分析,用于SNP分型与遗传多样性研究;
定点突变验证:引入或消除限制酶位点用于突变体筛选(如BamHI位点突变鉴定);
基因组作图:限制酶酶切图谱(Restriction Map)绘制,用于基因定位与物理图谱;
文库构建:基因组/cDNA文库的片段化与接头连接,构建测序文库;
基因编辑验证:CRISPR编辑后限制酶位点恢复/消除检测,验证编辑效率。
日常分子克隆中使用最广泛的为Type II型限制酶,占比超过90%。
常见的Type II 酶包括 BamHI、EcoRI、HindIII、XhoI、SmaI 等,切割位点精确、产物可重复,是基因工程的核心工具。
宝锐生物Ⅱ型限制性内切酶——快切系列
宝锐生物快切系列的限制性内切酶是经过基因工程重组改造,可在5-15 min内完成DNA精准切割的快速限制性内切酶。适用于质粒DNA、PCR产物以及基因组 DNA 等多种核酸底物的快速酶切反应。
所有快切系列内切酶在 10×Cut-Buffer通用缓冲液中均可保持100%酶活性,本品支持在单一反应体系内实现多种内切酶同步酶切,省去分步酶切操作,从而有效简化实验流程。
实验数据
1. 快切酶的快速酶切验证
不同酶量下切割1µg质粒效率验证:取宝锐生物快切酶做梯度稀释,37℃反应5min后做电泳验证。反应体系如下:
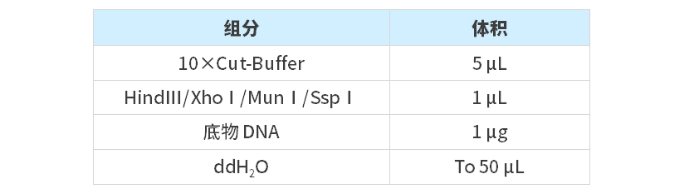
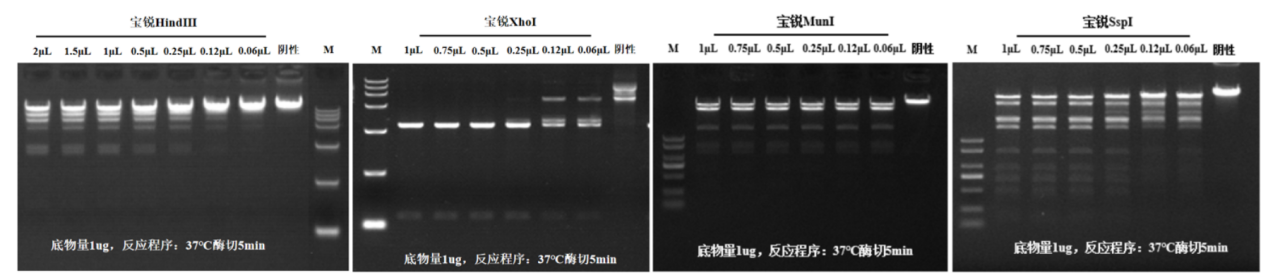
结论:1μL的宝锐快切酶在37℃条件下酶切5min即可完全酶切1ug的λ DNA或质粒DNA。酶切产物清晰,酶切产物的条带大小符合预期,无非特异性切割,即无星活性现象。
2. 快切酶对不同底物模板的酶切效率验证
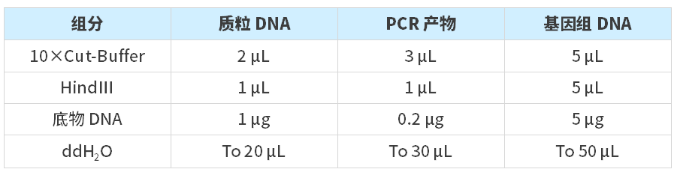
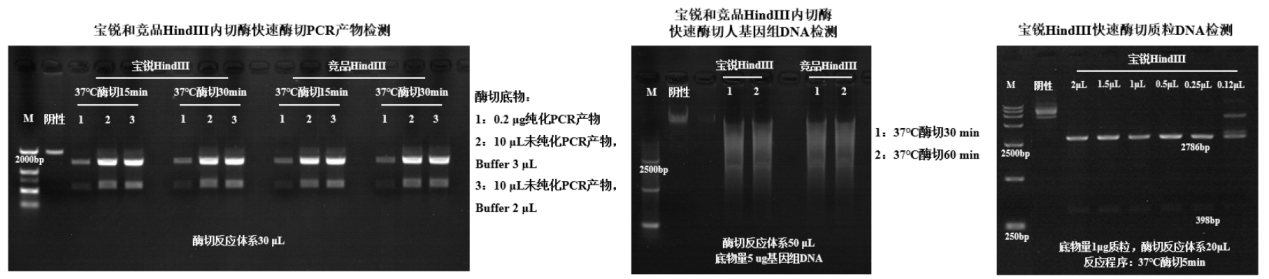
固定1μL HindⅢ酶量下,切割PCR产物、基因组DNA和质粒DNA的酶切效率验证:取竞品和宝锐生物HindⅢ内切酶1μL,按照以下反应体系配制,37℃分别温育5 min (质粒DNA),15/30 min (PCR产物),30/60 min (基因组DNA),反应结束后做电泳验证。
结论:
1. 使用PCR产物作为模板,用于验证快切酶对线性短片段核酸的酶切特异性与快速酶切活性。
使用0.2μg纯化PCR产物作为酶切底物,宝锐HindIII在37℃条件下反应15min即可将完全酶切(与30min酶切效果一致),酶切效果与竞品一致;
使用10 μL未纯化PCR产物作为酶切底物,宝锐HindIII在37℃条件下反应15min即可将完全酶切(与30min酶切效果一致),PCR残留体系未抑制酶活。
2. 使用基因组DNA片段作为模板,用于验证快切酶对复杂核酸底物的耐受能力及快速酶切稳定性。结果显示宝锐HindIII酶切30min有明显片段消化情况,酶切效果与60min一致,宝锐快切酶30min即可完成对复杂核酸底物的快速酶切。
3.使用质粒DNA作为模板,1μL的宝锐快切酶在37℃条件下酶切5min即可完全酶切1ug的质粒。
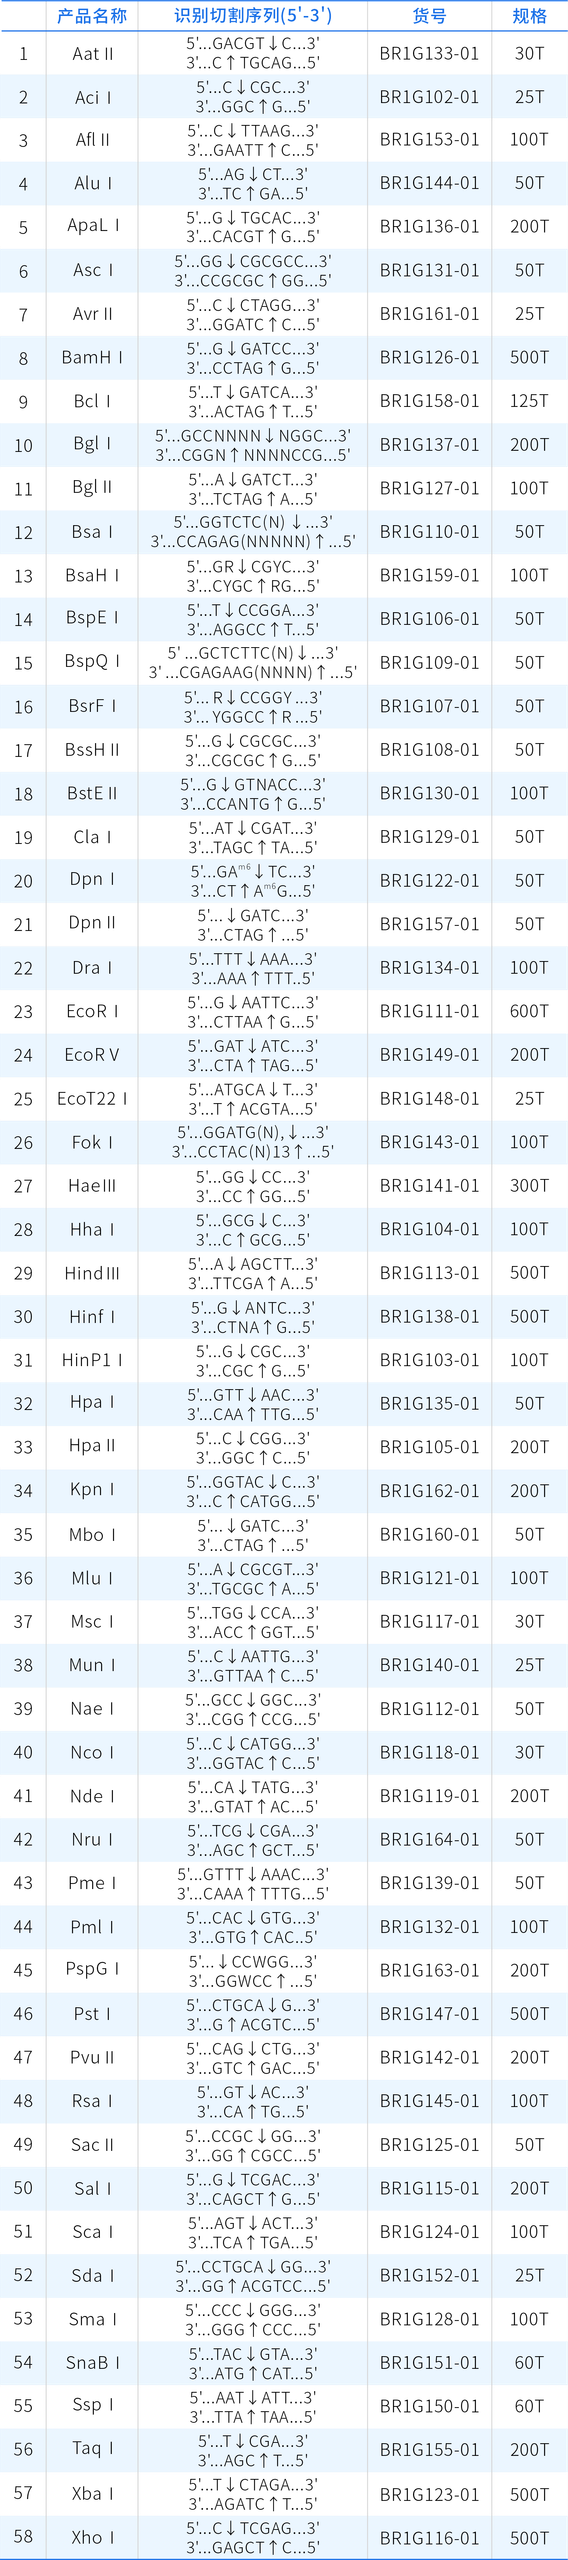
推荐产品清单
参考文献
1.Pingoud A, Wilson G G, Wende W. 2014. Type II restriction endonucleases–a historical perspective and more. Nucleic Acids Res, 42(12):7489-7527
2.Ershova A S, Rusinov I S, Spirin S A, Karyagina A S, Alexeevski A V. 2015. Role of Restriction Modification Systems in Prokaryotic Evolution and Ecology. Biochemistry (Mosc), 80(10):1373-1386
3.Vasu K, Nagaraja V. 2013. Diverse functions of restriction-modification systems in addition to cellular defense. Microbiol Mol Biol Rev, 77(1):53-72
4.Nikolajewa S, Beyer A, Friedel M, Hollunder J, Wilhelm T. 2005. Common patterns in type II restriction enzyme binding sites. Nucleic Acids Res, 33(8):2726-2733
5.Loenen W A, Dryden D T, Raleigh E A, Wilson G G, Murray N E. 2014. Highlights of the DNA cutters: a short history of the restriction enzymes. Nucleic Acids Res, 42(1):3-19
6.Steczkiewicz K, Muszewska A, Knizewski L, Rychlewski L, Ginalski K. 2012. Sequence, structure and functional diversity of PD-(D/E)XK phosphodiesterase superfamily. Nucleic Acids Res, 40(15):7016-7045